Force-Velocity Relationship
tgk @based_scienceForce-Velocity Relationship - это фундаментальная характеристика мышечного сокращения, которая описывает обратную зависимость между силой, развиваемой мышечным волокном, и скоростью его сокращения
Чем медленнее сокращается скелетная мышца, тем большую силу она может развивать при сокращении, и наоборот.
Прежде чем, мы перейдем к основе, я бы хотел немного углубить вас в физиологической природе мышечного сокращения: как оно происходит и какие элементы играют в нем ключевую роль для углубленного понимания концепции Force-Velocity.
Введение. Организация поперечно-полосатой мышцы

- Мышца заполнена тысячами или миллионами мышечных клеток (волокон), которые располагаются в основном параллельно друг другу.
- Каждая мышечная клетка (волокно) заполнена многочисленными, также параллельно лежащими, миофибриллами - длинными нитями толщиной около микрометра.
- Миофибриллы состоят из повторяющихся элементов - саркомеров (их длина 2–3 мкм, может варьироваться в зависимости от вида и ткани).
- Саркомер - это основная (структурно-функциональная) сократительная единица мышцы. В каждом саркомере располагаются толстые нити (филаменты), содержащие главный сократительный белок - миозин. От Z-линий к центру тянутся тонкие нити (филаменты), состоящие из актина и регуляторных белков - тропонина и тропомиозина.

Миозин - прототип молекулярного мотора - белка, который преобразует химическую энергию в форме АТФ в механическое действие при взаимодействии с актиновым филаментом, тем самым генерируя силу. Самым очевидным результатом такого действия является мышечное сокращение.
Всего существует более 13 различных классов миозинов. Каждый класс специализирован для разных функций, но основным, интересующим нас, является Миозин II выполняющий, в основном, мышечное сокращение.
Мышечное сокращение

1.Нервный импульс (сигнал) к мышце.
Нейротрансмиттер (вещество для передачи сигнала) ацетилхолин высвобождается из нерва и связывается с рецепторами на поверхности мышцы. Это вызывает распространение электрического сигнала по мышечной мембране и вглубь мышцы через специальные трубочки (Т-трубочки)
2. Высвобождение ионов кальция - запуск взаимодействия актина и миозина.
Электрический сигнал активирует рецепторы DHPR (диhydropyridine receptors) на Т-трубочке, которые механически соединены с каналами RyR1 (рианодиновыми рецепторами) на мешочке с кальцием - саркоплазматическом ретикулуме. Происходит физическое открытие этого канала, и большое количество кальция (Ca²⁺) поступает в саркоплазму
3.Регуляция кальция.
При поступлении, кальций связывается с белком тропонин C, который находится рядом с тропомиозином. Это вызывает конформационное изменение тропонина, который ослабляет сцепление на тропомиозине. Тропомиозин сдвигается в сторону, открывая доступ к сайтам связывания на актине.
4. Кросс-бридж цикл.
Серия действий между миозином и актином, когда миозиновые моторы (головки) захватывают актин, тянут его, двигая филаменты относительно друг друга, а затем отпускают, чтобы повторить цикл. Дальше в статье будет иллюстрация этого цикла.
5. Расслабление.
Из саркоплазматического ретикулума перестает высвобождаться кальций, в результате чего происходит его откачивание и отсоединение от Тропонина С. Тропонин в свою очередь перестает тянуть тропомиозин и открытые актиновые сайты блокируются.
Структура молекулы Миозин II
Полная молекула миозина II состоит из шести полипептидных цепей: двух тяжелых цепей (MHC, myosin heavy chain) массой 200-250 кДа каждая и четырех легких цепей - двух эссенциальных (ELC) по ~22 кДа и двух регуляторных (RLC) по ~19 кДа. Две тяжелые цепи организованы таким образом, что их N-концевые области формируют глобулярные головки (моторные домены), а C-концевые участки скручиваются друг вокруг друга, образуя α-спиральный хвост в конформации coiled-coil длиной около 1500 Å (150 нм).

Общее строение миозина
- Каталитический домен (active site) - отвечает за связывание и гидролиз АТФ, что запускает цикл рабочего хода
- Актин-связывающая поверхность - на ней расположены ключевые петли (loop 2, loop 3, HCM-loop), обеспечивающие контакт с актином, регулирующие динамику сцепления.
- Конвертерный домен (converter) - небольшой подвижный участок между каталитическим доменом и рычагом миозина. Он преобразует малые конформационные изменения, происходящие после гидролиза АТФ и высвобождения продуктов, в крупное смещение рычага
- Рычаг (lever arm) - вытянутая альфа-спиральная часть головки миозина. Рычаг многократно усиливает и передаёт механическое смещение от конвертера на остальную часть молекулы.
- Лёгкие цепи (ELC, RLC) - это малые по размеру белки закрепляются на рычаге и придают ему стабильность. ELC поддерживает жёсткость и правильную ориентацию рычага, а RLC может участвовать в регуляции сокращения.
- Хвостовая зона (coiled-coil) - С-терминальные участки тяжёлых цепей миозина закручиваются в двойную альфа-спираль (coiled-coil), формируя длинный стержень, соединяющий отдельные молекулы миозина.
Изоформы миозина различаются в зависимости от того, находятся ли они в медленных или быстрых мышечных волокнах.
Изоформа - это одна из нескольких разных форм одного и того же белка, которые отличаются по своей первичной структуре, но происходят из одного гена или семейства генов.
Медленные волокна. Тип I
Изоформа MyHC-I.
Основные свойства MyHC-I включают высокую окислительную способность, благодаря большому содержанию митохондрий и окислительных ферментов.
Медленные изоформы миозина можно считать близкими к группе сенсоров деформации. При приложении нагрузки к кросс-мостику высвобождение АДФ задерживается, и состояние присоединения сохраняется дольше, что позволяет генерировать силу без дополнительного расхода АТФ.
Быстрые волокна. Тип IIa
Изоформа MyHC-2A.
MyHC-2A находится на границе между окислительным (медленным) и гликолитическим (быстрым) метаболизмом и является промежуточной изоформой между MyHC-I и MyHC-2X.
Изоформа 2А обладает хорошо развитой системой саркоплазматического ретикулума, которая позволяет им эффективно захватывать и освобождать кальций.
2A имеют промежуточные уровни буферирования кальция - между медленными (низкое буферирование) и 2X/2B (высокое буферирование).
Быстрые волокна. Тип IIx
Изоформа MyHC-2X.
Самый быстрый тип. Характеризуются высокой способностью к быстрому сокращению и силе, но при этом имеют низкое содержание митохондрий, что делает их энергообеспечение преимущественно анаэробным и зависящим от гликолиза, что делает их самым гликолитическим типом встречающимся у людей.
Волокна быстрых типов объединяет количество кальция, высвобождаемое одним потенциалом действия, больше в быстрых, чем в медленных волокнах, например, 350 мкмоль/объём волокна в быстрых волокнах грызунов против 120 мкмоль в медленных волокнах
Тип Тип IIb
В мышцах человека MyHC-2B не обнаруживается, хотя соответствующий ген MYH4 присутствует в геноме, и волокна, типированные как 2B на основе окрашивания на ATФазу, на самом деле являются волокнами 2X на основе композиции MyHC
Цикл работы миозина. 10 ступеней
Три изоформы миозина проходят 10-ступенчатый цикл одинаково, однако с разными скоростями. При связывании миозина II с актином происходит гидролиз АТФ, и впоследствии неорганический фосфат Pi и АДФ высвобождаются из активного центра миозина. Эти реакции координируются с изменениями в структуре мотора, способствуя рабочему ходу (power stroke), который вызывает скольжение актиновых филаментов

Duty Ratio
Duty Ratio - это доля времени в цикле, когда миозин плотно связан с актином и генерирует силу. DR рассчитывается как отношение времени нахождения миозина в force-holding состоянии ко всему времени цикла АТФазы
Несмотря на различия изоформ, коэффициент рабочего цикла варьируется в узком 2-кратном диапазоне, тогда как экономичность использования АТФ варьируется 4-5-кратно.
Однако влияние DR не настолько большое в рамках Force-Velocity, так как с увеличением силы быстрые изоформы не показывают увеличение времени, поэтому слишком заострять внимания не имеет смысла. Но все же, кратко рассмотрим вариабельность взависимости от изоформы.

Применение внешней нагрузки (5 пН) приводит к небольшому снижению duty ratio у быстрых изоформ миозина и к минимальным изменениям у медленных. Медленные типы держат связь с актином примерно в 2 раза дольше, чем быстрые, что отражает их большую “экономичность” для поддержания силы.
«Быстрые моторы, такие как быстрый миозин II скелетных мышц, характеризуются низким duty ratio и низкой зависимостью от нагрузки, а также высокой термодинамической связью (KAD/KD) и высоким значением KCO.» (Источник)
Force-Velocity Relationship
1.1. Уравнение
В математическом виде, зависимость сила-скорость выражается формулой Хилла:
(F+𝑎)(𝑣+𝑏) = (F0+𝑎)𝑏
Где:
- F - сила, которую развивает мышца.
- F0 – максимальная сила мышцы при отсутствии движения (изометрическая сила).
- v – скорость сокращения мышцы.
- a и b – параметры, которые определяются экспериментально.
Это уравнение показывает, что чем медленнее сокращается мышца, тем большую силу она может генерировать, и наоборот.
Связь «сила–скорость» демонстрирует в целом гиперболическую форму. Однако при высоких нагрузках наблюдается отклонение от гиперболы, что приводит к образованию двойной гиперболической зависимости.

В зоне относительно малых и средних нагрузок поведение мышцы хорошо описывается уравнением Хилла, и график зависимости силы от скорости сокращения имеет чисто гиперболическую форму. Однако при приближении к максимальной изометрической силе (F₀) или при эксцентрическому сокращению, где скорость становится отрицательной - наблюдаются существенные отклонения от классической гиперболы.
Далее разберем, что влияет на отклонение от классической гиперболы.
1.2. Влияние изоформы
Различие между изоформами миозина определяет параметры сокращения и механические свойства волокон. Скорость укорочения мышечного волокна строго коррелирует с типом экспрессируемой изоформы миозина
Разнообразие кривизны соотношения сила–скорость, впервые обнаруженное в интактных мышцах ... подтверждено и на одиночных мышечных волокнах. Кривизна выражена слабее в быстрых, чем в медленных волокнах. В то же время изометрическое напряжение выше в быстрых волокнах по сравнению с медленными. (Schiaffino & Reggiani, 2011)
Современные исследования показывают, что именно изоформа миозина (и, в частности, домен конвертера) определяет степень отклонения force–velocity кривой от идеальной гиперболы. Быстрые изоформы придают кривой меньшую кривизну и увеличивают максимально достижимую скорость, а медленные - обеспечивают большую выносливость и более выраженное снижение скорости при увеличении нагрузки.
1.3. Роль конвертера в FVR
Конвертер важен для зависимости миозина от силы и определения кривизны FVR. Конвертер соединяет каталитический домен миозина с его рычагом, нековалентно взаимодействуя с релейной спиралью и основной лёгкой цепью (ELC). Это положение механически выгодно для преобразования небольших движений в каталитическом домене в более сильное движение рычага и, потенциально, для восприятия силы. Конвертер может передавать информацию о силе обратно в активный центр или изменять другие конформационные изменения белка, которые могут модулировать FVR. Благодаря вариациям в аминокислотной последовательности изоформы конвертера могут существенно влиять на кривизну FVR, определяя динамику мышечного сокращения и особенности работы быстрых и медленных волокон.
Мы проверили нашу гипотезу о том, что домен конвертера миозина играет критическую роль в механизме соотношения сила-скорость (FVR) мышцы. В соответствии с нашей гипотезой, мы наблюдали до 2,4-кратных изменений кривизны FVR. Максимальная скорость укорочения (v0) и оптимальная скорость для максимальной мощности также были изменены, но изометрическое напряжение и максимальная выработка мощности остались неизменными. (Newhard et al., 2019)
Данные из этого исследования ограничены, так как оно проводилось с в ходе эксперимента Drosophila (плодовой мушке). Однако тенденция сохраняется и у млекопитающих при сравнениях быстрых/медленных волокон. Это означает, что конвертер действительно играет большую роль в изменении кривой FVR, но конкретных данных пока нет.
В модели Хаксли скорость отсоединения кросс-мостиков под негативным напряжением (g₀) влияет на кривизну FVR, потому что количество таких мостиков зависит от скорости. Чем выше g0, тем меньше отрицательно нагруженных мостиков присоединено, и тем больше сила; это приводит к большей кривизне FVR
1.4. Роль кинетики поперечных мостиков
В режиме низких нагрузок (когда мышца быстро укорачивается) большая часть поперечных мостиков либо не успевают присоединиться, либо быстро отсоединяются, так как, они проходят мимо актиновых сайтов со скоростью, которая не позволяет им задержаться достаточно долго для прикрепления. Их вклад в генерацию силы минимален, соответственно кривая FVR становится выпуклой.
При изометрическом сокращении (нулевая скорость) максимальное количество кросс-бриджей может остаться прикреплённым, так как они не проходят мимо актиновых сайтов. Это приводит к максимальной общей силе.
Исследование, которое оценило количество прикреплённых кросс-бриджей и использовало рентгеновскую дифракцию под малым углом волокна, показало, что примерно 30% миозиновых моторов (максимум) прикреплены при изометрическом сокращении (нулевая скорость), с более чем пятикратным снижением при максимальной скорости укорочения (нагрузки близко к нулю).
Измерения показывают, что жёсткость миофиламентов возрастает параллельно силе даже при больших эксцентрических нагрузках, без существенного увеличения общего числа прикреплённых мостиков (Piazzesi et al., FIGURE 13). Это указывает на роль геометрических и механических изменений в существующих соединениях.
FVR: Что происходит при изменении нагрузки и скорости?
Force–Velocity Relationship - это фундаментальная характеристика мышцы, описывающая, как скорость укорачивания волокна зависит от величины развиваемой силы. Вся совокупность данных показывает, что эта связь имеет гиперболическую форму: чем больше сила (нагрузка на мышцу), тем медленнее она сокращается, и наоборот.
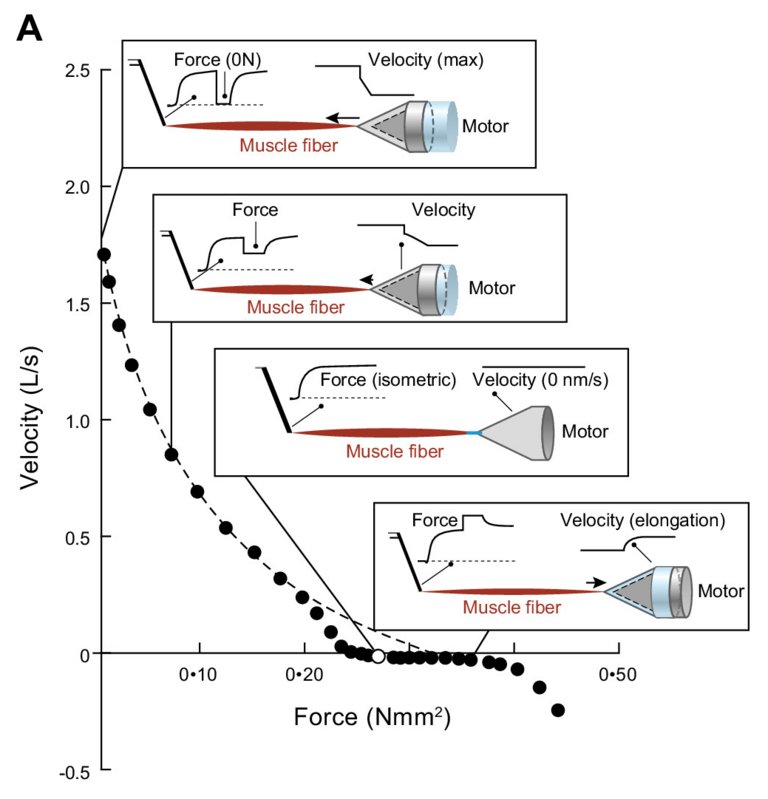
- Чем выше нагрузка, тем медленнее мышца сокращается (до полной остановки - изометрии).
При работе в зоне исключительно высоких нагрузок, когда скорость укорочения мышцы стремится к нулю, величина развиваемой мышцей силы достигает своего максимума - изометрической силы. Именно в этой точке force–velocity кривой наблюдается плато, соответствующее изометрическому сокращению.
При эксцентрическом сокращении (мышцу растягивают под нагрузкой, скорость отрицательна), сила может превышать изометрическую. В этом режиме кривая выходит за пределы классической гиперболы, и сила обусловлена особенностями механики прикреплённых поперечных мостиков, их натяжением и свойствами белка титина. Однако, у человека максимальная эксцентрическая сила ограничена нейронными механизмами в целях безопасности.
При работе в зоне высокой нагрузки - формируются адаптации связанные с высокой нагрузкой: гипертрофия мышц, рост жесткости сухожилий, усиление боковой передачи силы между волокнами, повышение числа рекрутируемых мотонейронов.
- Чем ниже нагрузка, тем быстрее мышца укорачивается, но сила при этом быстро падает.
Когда нагрузка на мышцу уменьшается, она начинает сокращаться быстрее. Это отражено на гиперболической кривой Хилла, где при снижающейся силе скорость укорочения волокна резко возрастает. Однако вместе с этим происходит быстрое снижение развиваемой силы.
Чем больше сила, действующая на двигатель (или мышцу), тем меньше скорость сокращения... По мере увеличения нагрузки на мышцу высокие скорости уменьшаются быстрее, а низкие — медленнее. Эта обратная гиперболическая зависимость между силой, действующей на мышцу, и скоростью укорочения была впервые математически описана А. В. Хиллом в 1938 году. (Newhard et al., 2019)
При работе в зоне низкой нагрузки - формируются адаптации за счет "скоростной" специфики или для компенсации высокой скорости отсоединения мостиков: повышение скоростных свойств мышц (реакция, спринт, быстрые движения), усиление роли нервной координации.
- Максимальная мощность на кривой FVR
На кривой Hill максимальная мощность достигается не на максимальной силе и не на максимальной скорости, а при промежуточных значениях. В большинстве мышц максимальная мощность производится при 30–40% от максимальной изометрической силы (F0) и примерно 30–40% от максимальной скорости (v0).
Подводя итоги
Мышечное сокращение - это сложный, но хорошо организованный процесс, базирующийся на взаимодействии белков актина и миозина внутри саркомера. Вся мышечная работа от простых движений до максимальных усилий строится на серии цикличных действий (кросс-бридж цикл), превращающих химическую энергию в механическую работу.
Функции и возможности мышечного волокна определяются типом волокон, изоформами миозина, архитектурой и динамикой прикрепления кросс-мостиков.
Зависимость силы и скорости (кривая FVR) - это фундаментальный принцип мышечной механики, отражающий, как мышца работает в зависимости от приложенной нагрузки . Максимальная мощность достигается при оптимальном сочетании силы и скорости, а не при крайних значениях. Тренировки в разных ее зонах развивают разные адаптации.
Глубокое понимание этой зависимости позволяет управлять тренировками, оптимизировать развитие мышц для специфических целей, а также лучше объяснить различия между типами мышц и их адаптациями.
Источники
1 https://pmc.ncbi.nlm.nih.gov/articles/PMC7164502/
2 https://journals.physiology.org/doi/full/10.1152/physrev.00014.2023#F0001
3 https://www.ncbi.nlm.nih.gov/books/NBK9961/
4 https://pmc.ncbi.nlm.nih.gov/articles/PMC3840917/
6 https://royalsocietypublishing.org/doi/10.1098/rspb.2020.2895
7 https://pubmed.ncbi.nlm.nih.gov/31387944/
8 https://journals.physiology.org/doi/full/10.1152/ajpcell.00494.2018
9 https://pubmed.ncbi.nlm.nih.gov/30865518/
10 https://www.sciencedirect.com/science/article/pii/S1084952111001716