Дети омикрона
GET OUT OF MEКак мы уже говорили совсем недавно, в Европе набирает обороты подлиния омикрона BA.2, которая, похоже, спровоцировала разворот нисходящего тренда заболеваемости в Дании и всплеск детских госпитализаций в нескольких странах. Однако рассказать о том, что представляет из себя ВА.2, не так-то просто, не касаясь всей клады GRA - всего омикрона по классификации GISAID.
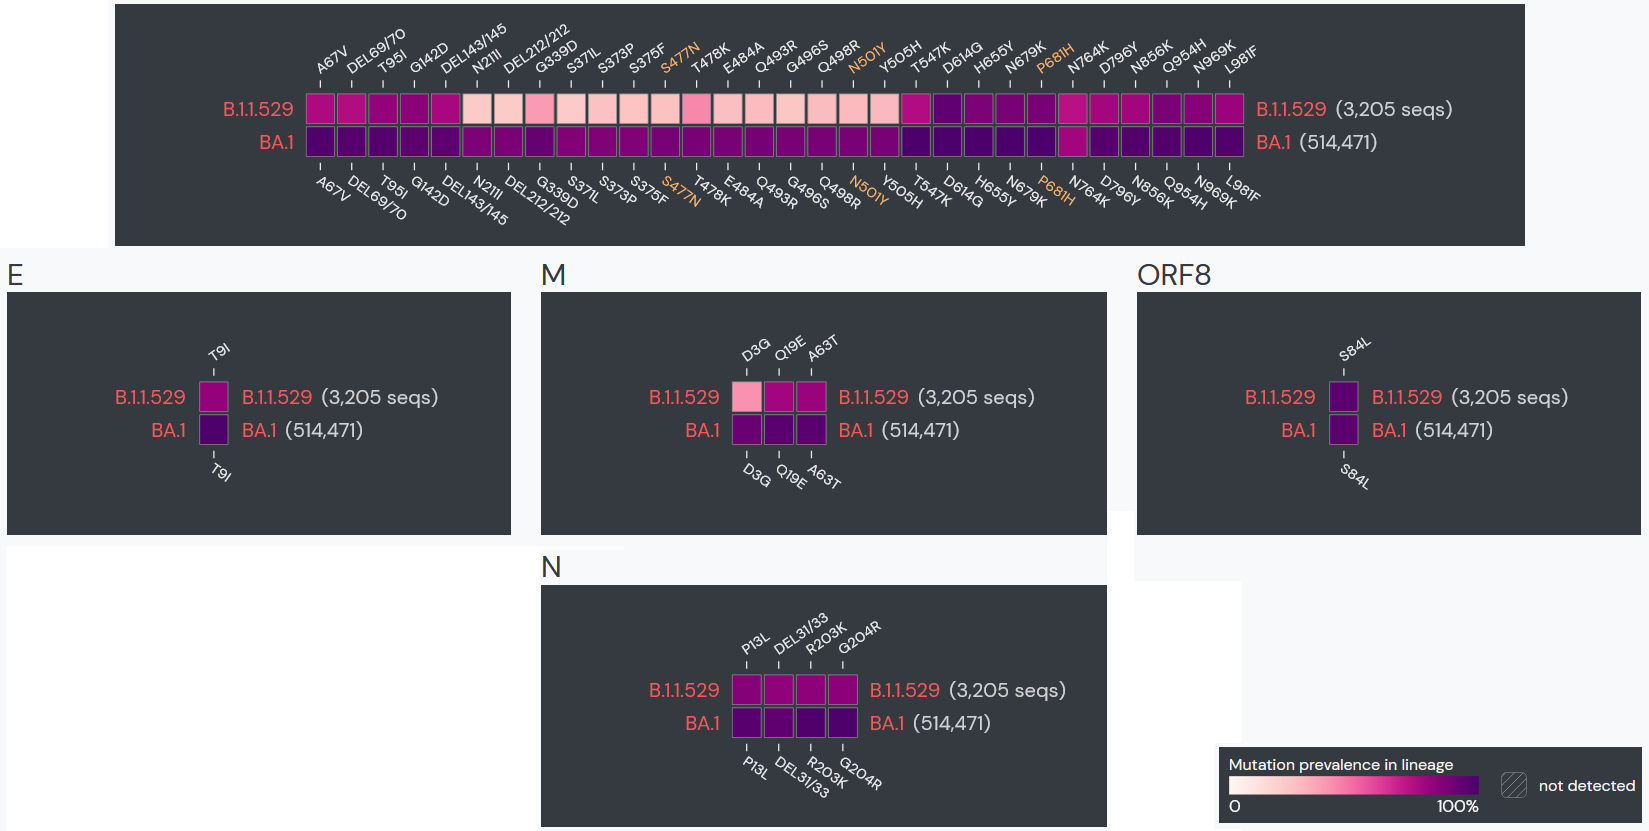
Впервые омикрон обнаружили в ноябре 2021. В конце этого текста мы посмотрим на схематичную родословную подвариантов омикрона, построенную на последовательностях геномов, для этого нам следует выбрать геномы, необходимые для построения. Самые первые сиквенсы идентифицировать оказалось непросто из-за путаницы с датами в GISAID, поэтому для иллюстрации просто возьмем ботсванские геномы от середины ноября 2021 года. Для классификации линий используется номенклатура Pangolin, которая кодирует линии набором букв и цифр вида B.1.1.336, B.1.617.2 и так далее. Наши ботсванские образцы Pangolin классифицирует как B.1.1.529 - это корневая линия омикрона, которая не имеет значительных отличий от успешной линии ВА.1 в аминокислотных последовательностях, но имеет некоторые уникальные нуклеотидные замены в некодирующих регионах генома. Тепловая карта со сравнением набора аминокислотных замен в белках В.1.1.529 и ВА.1 представлена на рисунке 1.
7 декабря 2021 года было предложено разветвить В.1.1.529 на ВА.1 и ВА.2, поскольку два различных подварианта уже были описаны, и отсутствие ветвления вызывало сложности. ВА.1 - самый успешный из омикронов на сегодняшний день. Он, как настоящий сорняк, буквально заполонил практически весь мир с ужасающей скоростью. О его свойствах уже сказано очень многое, поэтому нет особого смысла подробно на нем останавливаться. Стоит лишь вспомнить, что, похоже, он вызывает заболевание, реже приводящее к госпитализации и смерти по сравнению с дельтой. Из-за изменившегося S-белка он по большому счету потерял сродство к протеазе TMPRSS2, это привело к смене основного пути входа в клетку: раньше вирус проворачивал это с помощью слияния мембран, а теперь пользуется эндосомальным путем - с помощью мембранного пузырька, из которого выбирается уже внутри клетки. Также ВА.1 потерял способность образовывать синцитии.
В данный момент от ВА.1 отпочковался новый подвариант ВА.1.1, который помимо уже имеющегося внушительного набора замен в S-белке имеет замену R346K. Мы писали об этом варианте в статье Кухонная молекулярка: омикрон в России; в данный момент сохраняется впечатление, что именно ВА.1.1 доминирует в России по состоянию на конец января. Для иллюстрации линии ВА.1 и подварианта ВА.1.1 возьмем ранние южноафриканские и случайные поздние европейские (пусть будет Бельгия) сиквенсы соответственно.
Казалось бы, после ВА.1 должен следовать ВА.2, но куда корректнее будет сначала обсудить ВА.3. Дело тут, по-видимому, в том, что ВА.2 попросту раньше назвали. Линия ВА.3 очень похожа на ВА.1 и появилась в номенклатуре Pangolin 14 декабря 2021 года. У ВА.3 нет ни одной уникальной замены в S-белке, и фактически эта линия является продолжением ВА.1. О свойствах вирусов этой линии данных пока нет, однако нет и существенных оснований полагать значительные отличия этих свойств, поскольку линии весьма сильно похожи. Сравнение всех трех линий показано на рисунке 2.
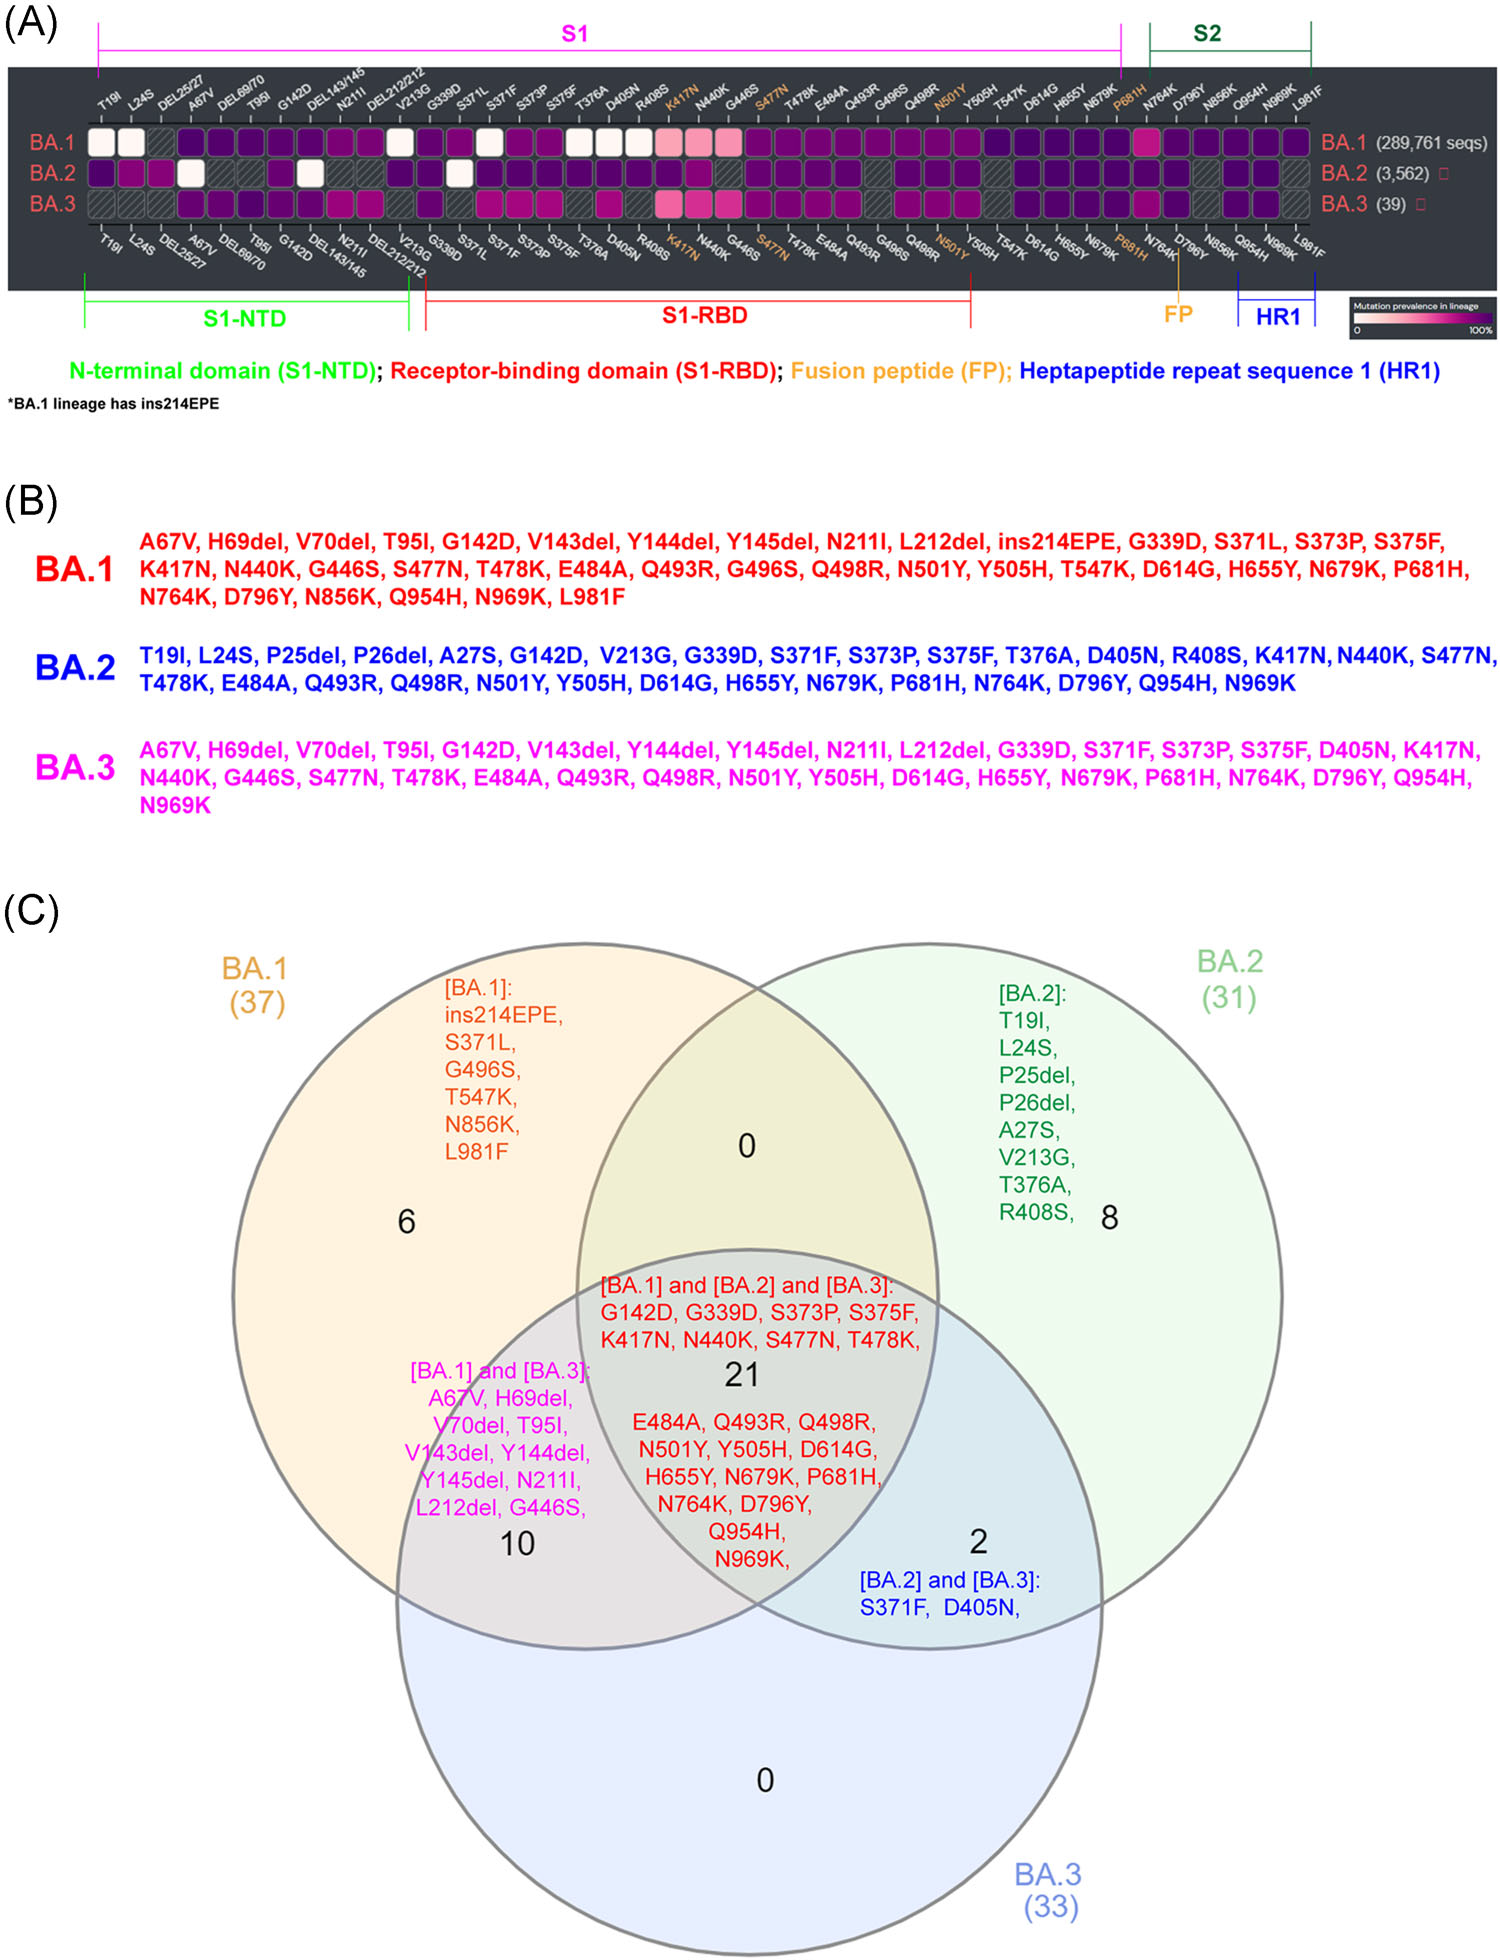
Как видно из рисунка 2С, в S-белке ВА.3 21 общая замена с соответствующими белками BA.1 и BA.2, уникальных замен, как уже было упомянуто, ВА.3 не имеет. ВА.3 также лишен вставки 214ЕРЕ, однако содержит основные замены, связанные с ускользанием от нейтрализации, и делецию 69-70 аминокислот, которая позволяет детектировать его с помощью ПЦР на выпадение мишени в гене S (SGTF). Общих с ВА.2 замен у него всего две, тогда как с ВА.1 его связывают 10 замен, не присутствующих в ВА.2. В качестве иллюстрации для ВА.3 возьмем пять ранних южноафриканских и три европейских (Польша и Англия) сиквенса.
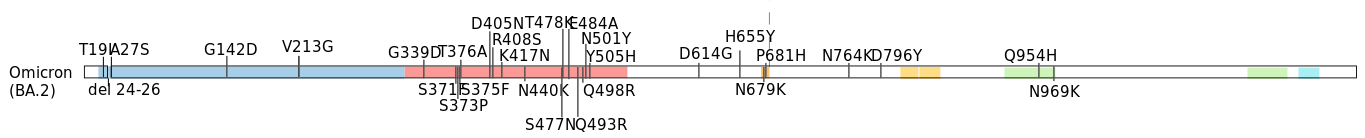
Перейдем к ВА.2, который в общем-то и является причиной написания данного текста. Этот вариант имеет общий скелет мутаций с другими омикронами, однако обладает как минимум 8 уникальными заменами в S-белке, а также имеет порядка 6 уникальных замен в белках, кодируемых orf1ab. ВА.2 не имеет ни делеции 69-70, ни инсерции 214EPE, что делает его "стелс-вариантом", поскольку ПЦР-системы для дифференциации омикрона направлены в основном именно на эти локусы. Также он лишен очень важной замены G446S, что заметно снижает его способность уходить от антител. При этом ВА.1.1 в этом расчете показал наилучшую способность к ускользанию благодаря R346K. Тем временем в Индии обнаружились изоляты ВА.2, содержащие R346K - такие изоляты могут иметь повышенную способность к ускользанию. Схема S-белка ВА.2 изображена на рисунке 3.
Несмотря на общее сходство с ВА.1, ВА.2, вероятно, может вызывать ранние реинфекции у переболевших ВА.1, однако пока для окончательного понимания недостаточно данных. ВА.2 широко распространился как в Азии - его обнаруживают в Таиланде, Индии, Катаре, - так и в Европе, где он неспешно вытесняет ВА.1. О ситуации с ВА.2 в Дании и Норвегии ранее писал Александр Драган. Судя по всему, ВА.2 обладает повышенной трансмиссивностью по сравнению с ВА.1, однако не вызывает по крайней мере значительно более тяжелого заболевания: разницы по тяжести течения с ВА.1 пока не выявлено. Датский Statens Serum Institut дает оценку разницы трансмиссивности в полтора раза в пользу ВА.2 по сравнению с ВА.1, при этом роста доли госпитализаций не наблюдается. Для иллюстрации ВА.2 мы используем ранние сиквенсы из Южной Африки, свежие из Дании и чуть менее свежие из Индии и Канады.
Итак, мы обсудили корневую линию В.1.1.529 три подварианта омикрона - ВА.1, ВА.2 и ВА.3 (даже три с половиной - еще ВА.1.1), которые представляют собой что-то вроде сестринских линий. Теперь посмотрим, как это выглядит на филогенетическом дереве. Его можно увидеть на рисунке 4.
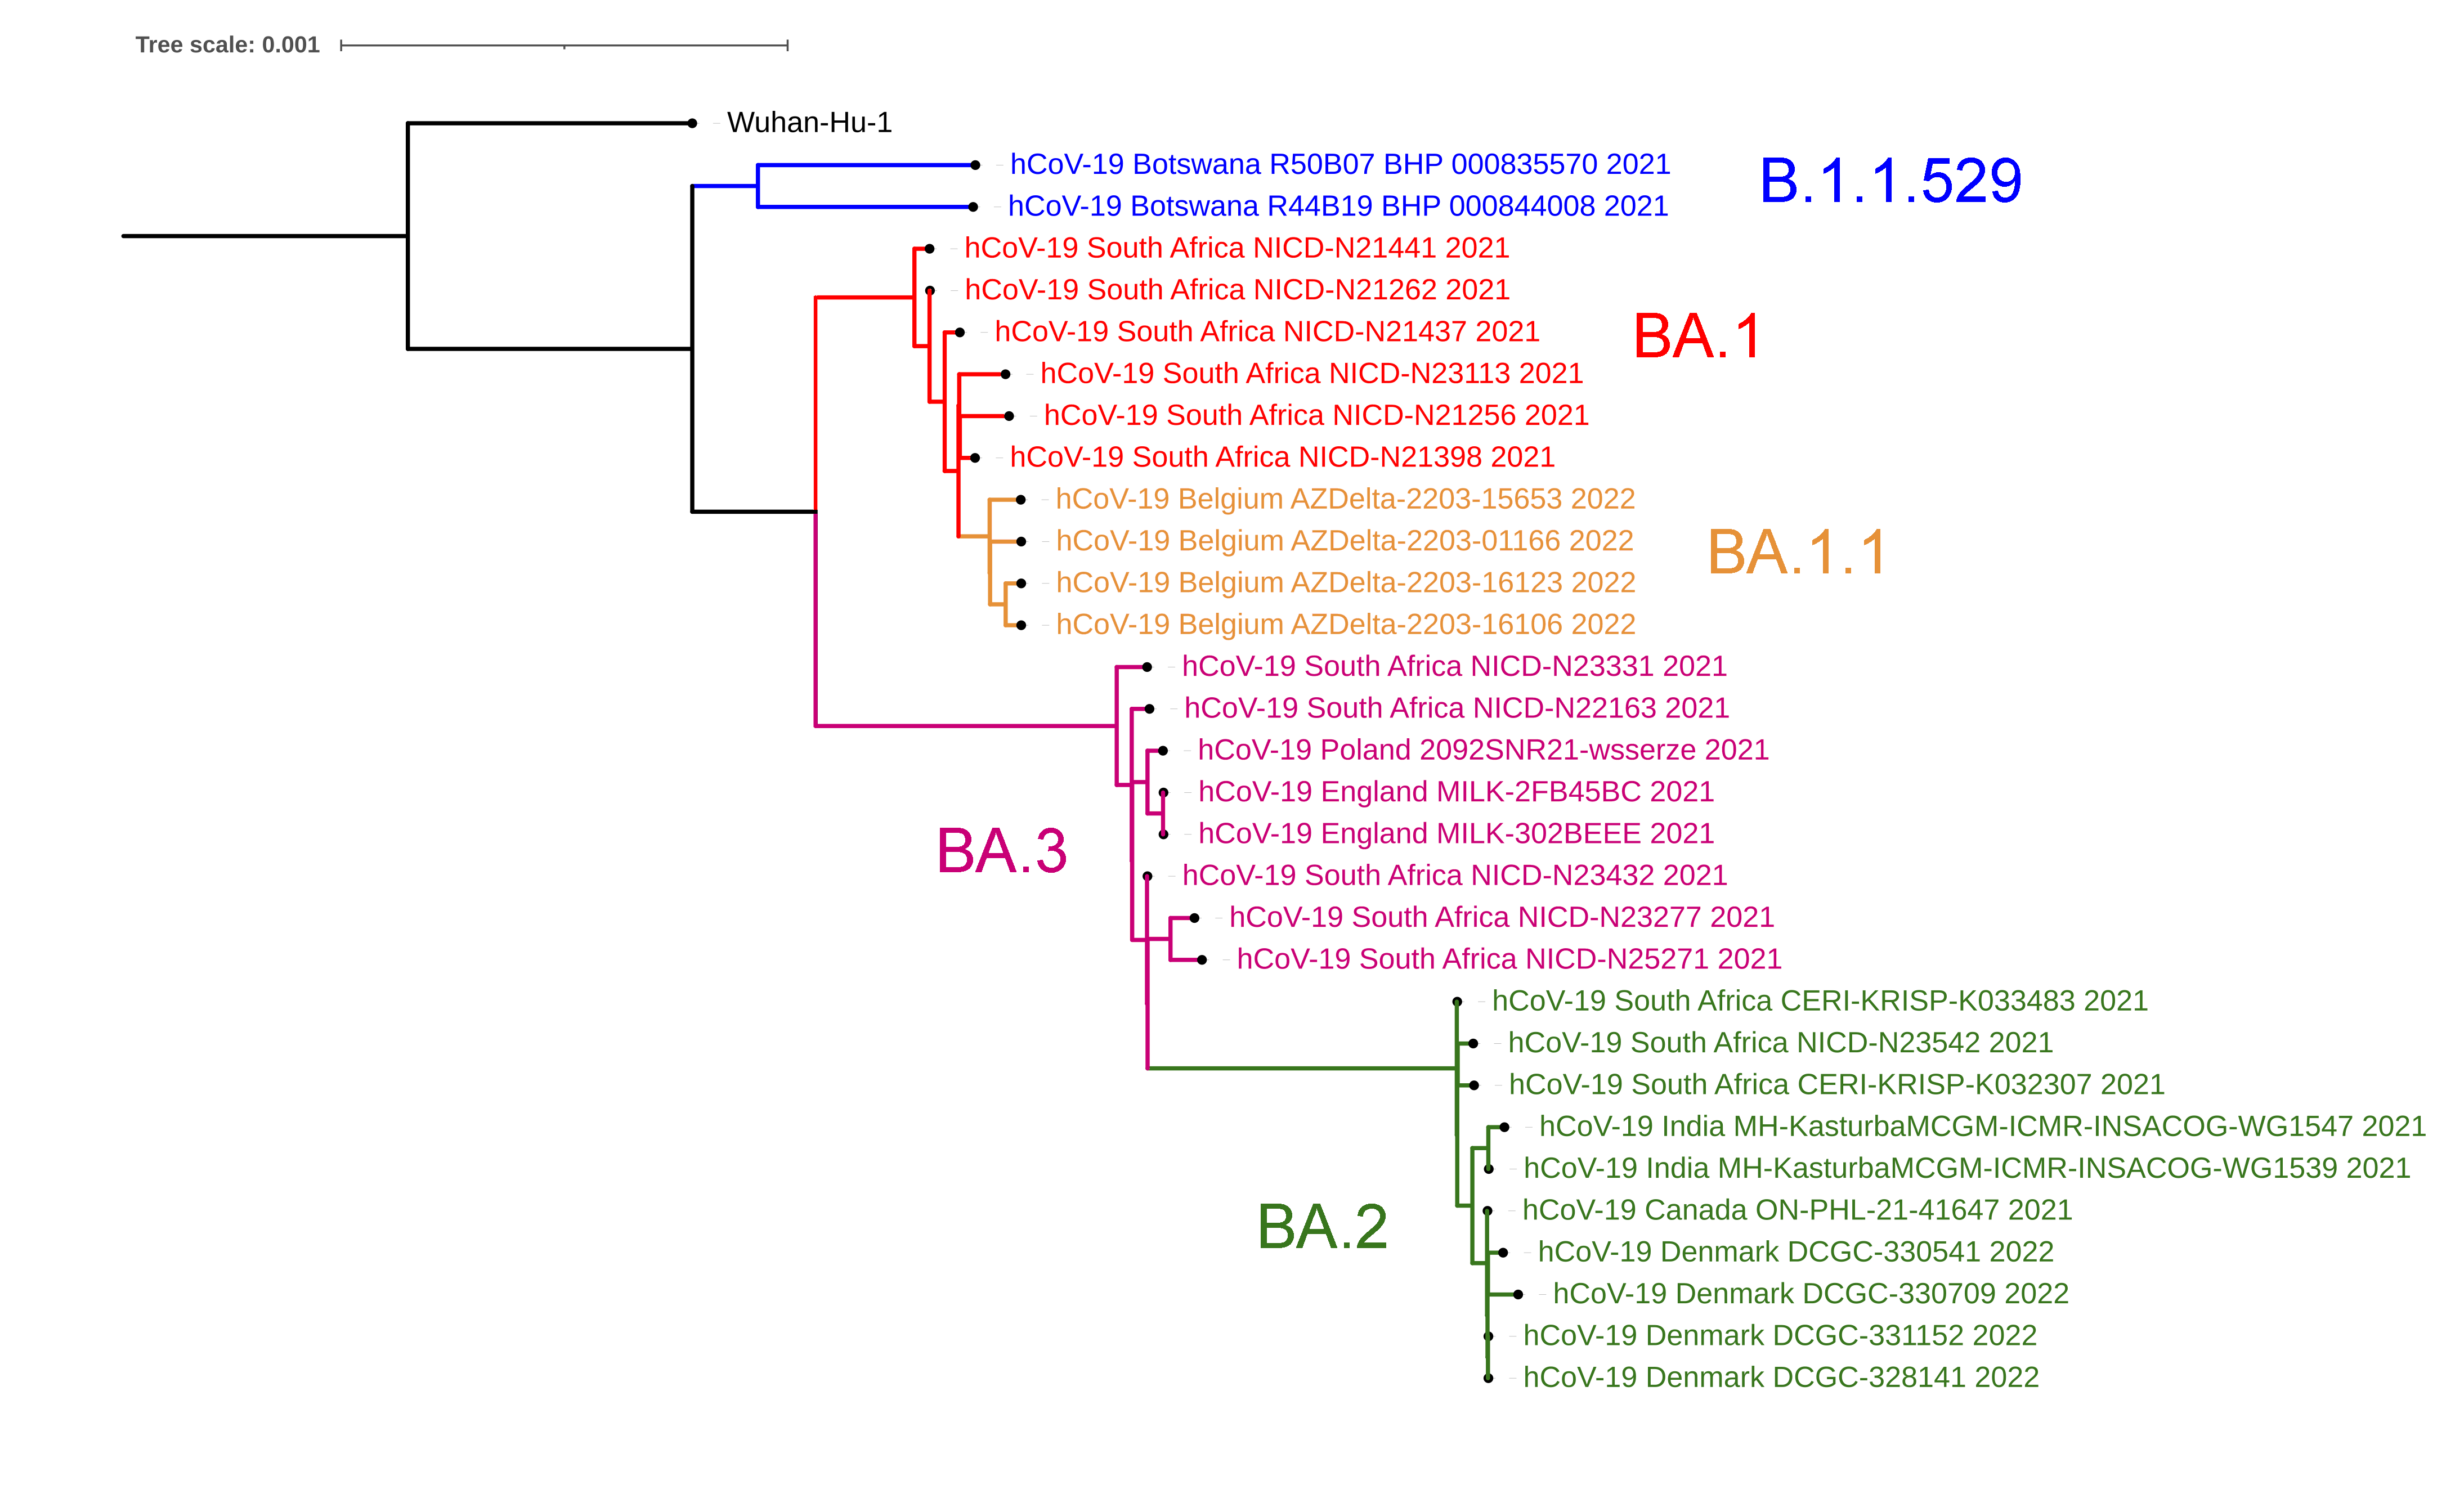
Референсный геном Wuhan-Hu-1 использован в качестве корневого узла. По филогении изолятов хорошо видно, например, что ВА.3 существенно ближе к ВА.1, чем ВА.2, однако происхождение ВА.2 по-прежнему остается загадкой. Он ближе к ВА.3, чем к ВА.1 и В.1.1529, однако это не очень проясняет ситуацию. Авторы работы в Nature, посвященной эволюции омикрона, обратили внимание на то, что при построении дерева по региону генома 21691-22587 ВА.1 и ВА.3 образуют кластер с популяцией вирусов эта и дельта, тогда как ВА.2 кластеризуется с другой субпопуляцией вирусов варианта дельта (см. Supplementary Figure 6). Они полагают, что это может означать событие рекомбинации с вирусом не из линии В.1.1 в ходе ответвления ВА.2, однако доказательств такой рекомбинации нет.
Собственно, так и выглядит семейство омикрона по состоянию на конец января 2022 года. Как оно будет меняться с течением времени - можно лишь гадать.